

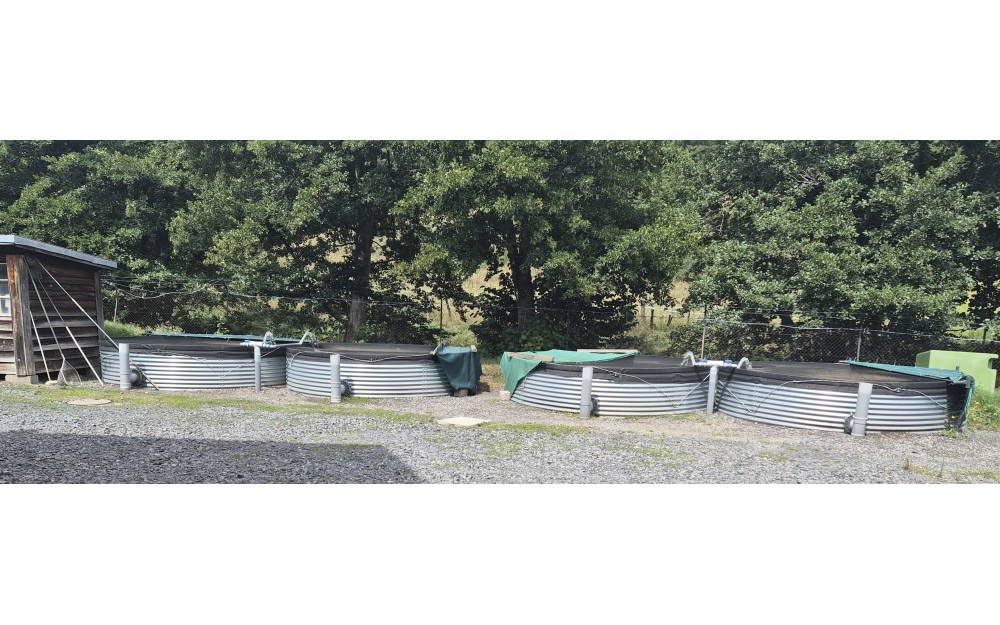
El dióxido de carbono en acuicultura: el asesino silencioso
En un sistema de acuicultura de recirculación (RAS), la atención del piscicultor se centra naturalmente en los parámetros más inmediatos: agua clara, niveles de oxígeno disuelto próximos a la saturación y concentraciones de amoníaco y nitritos controladas eficazmente por el biofiltro. Sin embargo, un peligro invisible y silencioso amenaza con frecuencia las explotaciones acuícolas intensivas, especialmente las dedicadas a la producción de salmónidos: la acumulación de dióxido de carbono (CO₂) disuelto.
Generado continuamente por la respiración de los peces y la actividad biológica de las bacterias nitrificantes, el CO₂ se acumula a niveles críticos a medida que aumentan los índices de recirculación del agua. Con demasiada frecuencia, el error técnico consiste en responder al estrés respiratorio de los peces aumentando la oxigenación. Sin embargo, la solución es contraintuitiva: saturar el agua con oxígeno puro no permite eliminar el dióxido de carbono. Los peces pueden morir por hipercapnia o desarrollar una nefrocalcinosis grave en un agua que, a pesar de ello, está enriquecida hasta alcanzar una saturación de oxígeno del 120 %.
Comprender la dinámica del CO₂, controlar su impacto sobre el pH y diseñar unidades de desgasificación por stripping mecánicamente eficientes y adaptadas a la biomasa de peces no son opciones de confort: son pilares fundamentales para garantizar el éxito de su instalación de producción.
I. La fisiología de los peces frente al CO₂: los riesgos biológicos
En los sistemas de acuicultura de recirculación (RAS), la acumulación de dióxido de carbono (CO₂) es una de las consecuencias del aumento de la biomasa y de la reducción de los aportes de agua nueva.
Por cada kilogramo de oxígeno consumido por los peces, se producen de media entre 1,3 y 1,4 kg de CO₂. Si este gas no se elimina del agua a la misma velocidad a la que se genera, atraviesa la barrera branquial y altera profundamente la fisiología de los peces.
Hipercapnia y efecto Root
El aumento del CO₂ disuelto en el agua reduce el gradiente de presión parcial entre la sangre del pez y su entorno. El CO₂ se acumula en la sangre del animal: este fenómeno se conoce como hipercapnia. Esta situación provoca una acidificación del plasma sanguíneo (acidosis respiratoria).
En los peces, y especialmente en los salmónidos, esta disminución del pH sanguíneo desencadena un fenómeno fisiológico crítico conocido como efecto Root.
A diferencia del efecto Bohr (que reduce la afinidad de la hemoglobina por el oxígeno), el efecto Root va más allá: reduce la capacidad máxima de la hemoglobina para fijar oxígeno, incluso cuando el agua está saturada de este gas.
El pez se encuentra entonces en un estado de hipoxia tisular interna.
Los síntomas de comportamiento son evidentes: letargo, pérdida de apetito, disminución del índice de conversión alimenticia y mayor sensibilidad a las infecciones oportunistas.
Nefrocalcinosis: el punto de no retorno
El riesgo más insidioso asociado a una exposición crónica a concentraciones elevadas de CO₂ (generalmente a partir de 15 a 20 mg/L) es la nefrocalcinosis.
Para compensar la acidosis sanguínea, el pez intenta regular su pH interno reteniendo iones bicarbonato y excretando calcio y fosfato a través de los riñones.
Esta concentración anormal de minerales en los riñones provoca la precipitación de cristales de fosfato cálcico. Los riñones del pez se calcifican, se hinchan y sufren daños irreversibles.
La nefrocalcinosis altera de forma permanente la capacidad de osmorregulación del animal.
Un lote de juveniles afectados por nefrocalcinosis en una incubadora puede presentar una mortalidad masiva durante las siguientes fases de crecimiento.
Umbrales críticos en producción intensiva
La sensibilidad varía según las especies y las fases de desarrollo, pero las recomendaciones para los sistemas RAS establecen los siguientes límites:
- Incubadoras y criaderos (salmónidos): < 10 mg/L (las fases larvarias y las primeras etapas de alimentación son las más vulnerables).
- Engorde (salmónidos): < 15 mg/L como máximo.
- Especies más tolerantes (lubina, dorada, tilapia): < 20 a 25 mg/L, aunque los mejores resultados productivos se registran siempre por debajo de 15 mg/L.
II. El equilibrio químico del agua: el triángulo pH / Alcalinidad / CO₂
Para controlar el CO₂ en un sistema de recirculación, es imposible considerarlo como un gas aislado.
En cuanto el dióxido de carbono se disuelve en el agua, interactúa químicamente con las moléculas de H₂O para formar el sistema del carbono inorgánico total (CIT).
Este sistema se basa en un equilibrio dinámico entre tres niveles.
El papel fundamental del pH
La proporción de cada una de estas formas químicas depende prácticamente por completo del pH del agua:
- A un pH inferior a 5, el carbono está presente prácticamente en su totalidad en forma gaseosa (CO₂).
- A un pH de 6,3, se alcanza el equilibrio: 50 % de CO₂ gaseoso y 50 % de iones bicarbonato (HCO₃⁻).
- Entre pH 7 y pH 8,5 (el intervalo objetivo en acuicultura), la mayor parte del carbono se transforma en iones bicarbonato, que no son tóxicos para los peces.
En los sistemas RAS, las bacterias nitrificantes del biofiltro consumen grandes cantidades de carbonatos para oxidar el amoníaco y transformarlo en nitrato, liberando iones de hidrógeno (H⁺) y provocando una disminución del pH.
Por ejemplo, si el pH desciende de 7,5 a 6,8, una parte importante de los bicarbonatos inofensivos puede transformarse instantáneamente en CO₂ libre, gaseoso y altamente tóxico, incluso sin que los peces hayan aumentado su respiración.
Gestión del TAC (alcalinidad): el sistema tampón indispensable
La alcalinidad (o Título Alcalimétrico Completo) representa la capacidad del agua para neutralizar los ácidos, es decir, su capacidad amortiguadora o efecto tampón.
En los sistemas RAS, para mantener un pH estable (en torno a 7,2-7,5) y evitar que los bicarbonatos se transformen en CO₂ libre, el operador debe compensar el consumo del biofiltro mediante la adición de una base (bicarbonato de sodio, hidróxido de sodio o cal).
Sin embargo, aumentar la alcalinidad sin disponer de un sistema de extracción física del gas es una solución a corto plazo.
El agua acumulará una cantidad enorme de carbono inorgánico.
Ante la más mínima alteración o disminución del pH, esta reserva puede liberarse en forma de CO₂ libre, provocando una crisis repentina y grave de hipercapnia en los tanques.
Por tanto, la química del agua (gestión del TAC y del pH) y la física (extracción mecánica del gas) son las dos caras de una misma moneda.
OxyGuard TGP (Presión Total de Gases)
III. Por qué la oxigenación por sí sola es un error técnico y físico
Ante un grupo de peces que presenta signos de estrés respiratorio, el primer reflejo de muchos operadores es abrir las válvulas de suministro de oxígeno puro.
Aunque esta acción puede enmascarar temporalmente los síntomas al aumentar la presión parcial de O₂ en la sangre, se basa en un desconocimiento de la física de los gases y, a largo plazo, resulta contraproducente.
La ley de Dalton y la independencia de las presiones parciales
La disolución y la liberación de gases en el agua se rigen por leyes físicas, especialmente por la ley de Dalton.
Según estos principios, cada gas se disuelve o se libera del agua en función de su propio gradiente de presión parcial entre la fase líquida y la fase gaseosa, independientemente de los demás gases presentes.
En términos prácticos: saturar, o incluso sobresaturar, el agua hasta un 150 % o un 200 % de oxígeno puro (mediante conos de disolución o difusores de microburbujas) no tiene absolutamente ningún efecto sobre el CO₂.
Las moléculas de CO₂ permanecen en el agua.
La inyección de oxígeno puro no genera el volumen de gas necesario ni la superficie de intercambio activa para permitir que el dióxido de carbono salga de la fase líquida.
De este modo, podemos encontrarnos ante la situación paradójica —y potencialmente mortal— de criar peces en un agua muy oxigenada, pero que, sin embargo, está saturada de CO₂ libre tóxico.
La trampa del confinamiento de las microburbujas
El uso intensivo de difusores de oxígeno en los tanques, sin un sistema de extracción externo, agrava la situación.
La ausencia de burbujas de aire gruesas (que generan movimiento y rompen la tensión superficial en la superficie del tanque) mantiene el agua en un estado en el que los gases volátiles no pueden escapar eficazmente.
Para eliminar el CO₂ se necesita un volumen suficiente de gas y, más concretamente, aire.
¿La solución?